評価分科会名: 爬虫類・両生類分科会
1. 判定対象種情報
| ⽬名 | 有鱗目 | 科名 | トカゲ科 |
|---|---|---|---|
| Order | Squamata | Family | Scincidae |
| 和名 | 三宅島、八丈島、青ヶ島のオカダトカゲ | ||
| 学名 | Plestiodon latiscutatus Hallowell, 1861 | ||
2. カテゴリー判定: 絶滅のおそれのある地域個体群(LP) 判定基準: ②
| 基準A: ― | 基準B: CR | 基準C: ― | 基準D: ― | 基準E: ― |
B1. 出現範囲が100 km²未満であると推定されるほか、次の兆候が見られる。 a) 生息地が過度に分断されているか、ただ1か所の地点に限定されている。 【過度に分断】 いずれも小島嶼の集団であるため、それぞれが孤立個体群であるであることは自明。国内外来種のニホンイタチが三宅島、八丈島、青ヶ島に1960年代以降に導入され、八丈島では1960年代から、三宅島では1980年代半ばから、青ヶ島でも三宅島とほぼ同時期に減少を始めた。各島のイタチ個体群の生息密度はその後も高い状態が継続しており、三宅島・八丈島・青ヶ島のオカダトカゲ個体群は依然として低密度状態にある。オカダトカゲの生息地は各島内に散在するが、長期間安定的に目撃できる場所は少ない。また八丈島では、2000年代に近縁種ニホントカゲの導入が確認され、オカダトカゲとの交雑が進み、純粋なオカダトカゲが生息する場所が狭められている。したがって、3島すべてにおいて、島内各地に、本種がほとんどあるいは全く生息しない地点(調査したにも関わらず発見できなかった地点)があり、残存する生息地はそれぞれ孤立し、消失の危機にあると考えられる。 b) 出現範囲、生息地面積、生息地の質、生息地点数、成熟個体数のいずれかに継続的な減少が推定・予測される。 【判断理由】 三宅島、八丈島、青ヶ島ともに、主たる減少要因となっているニホンイタチの密度が高いままである。特に、三宅島と青ヶ島においては、イタチは島内全域に渡ってオカダトカゲに継続的に捕食圧をかけていると考えられる。また、いずれの島でも、トカゲがイタチから身を隠す石垣などの構造物が改変され、個々の生息地の低密度化が更に進行する懸念もある。八丈島においては、ニホントカゲの導入による交雑が進行しているため、八丈島の個体群が最も危機的な状態にある。外来のニホントカゲについては、以下のような状態にある。八丈島では、北東部に見られるほぼ純系のニホントカゲ集団が、オカダトカゲ集団に比べて高密度かつ連続的に広く(500 m程度に渡る)分布する傾向にある。また、大賀郷集落北部において純系に近いオカダトカゲ生息地点の近く(900 mほど)にニホントカゲ型遺伝子頻度の高い交雑集団が見られるケースもある。ニホントカゲ型の遺伝子の供給が今後も継続し、純系のオカダトカゲ集団が交雑集団に置き換わってゆくと予想される。 以上より、絶滅のおそれがあり、かつ次の基準に該当する地域個体群である。 ②地域型としての特徴を有し、生物地理学的観点から見て重要と判断される地域個体群で、絶滅に瀕しているか、その危険が増大していると判断されるもの。 【判断理由】 伊豆諸島では島嶼ごとにオカダトカゲの捕食者の構成が異なり、各島嶼のオカダトカゲ集団は、その捕食圧や捕食者の特性に応じて、色彩や繁殖生態が多様化している。三宅島・八丈島・青ヶ島の集団は、哺乳類・ヘビ類の捕食者を欠く環境下で他集団や近縁種に見られない独自の特徴を獲得しており、生物地理学的に重要な個体群である。また、強力な捕食者を欠く環境に適応した個体群であることが、ニホンイタチの捕食圧に対する著しい脆弱性と関連すると考えられる。
3. 概要
伊豆諸島と伊豆半島の固有種で、海岸から常緑広葉樹林の林床まであらゆる環境に生息する。肉食性の哺乳類やシマヘビのいない三宅島、八丈島、青ヶ島では極めて高密度で生息し、少ない一腹卵数、隔年繁殖など独特の生活史的特性を示していた。しかし、1980年代前半にかけてニホンイタチが導入され急速に個体群が縮小し、現在、個体群消滅の危機に瀕している。八丈島では外来ニホントカゲとの交雑により遺伝的固有性が消失する恐れがある。
4. 掲載種の情報
基礎情報
【形態】
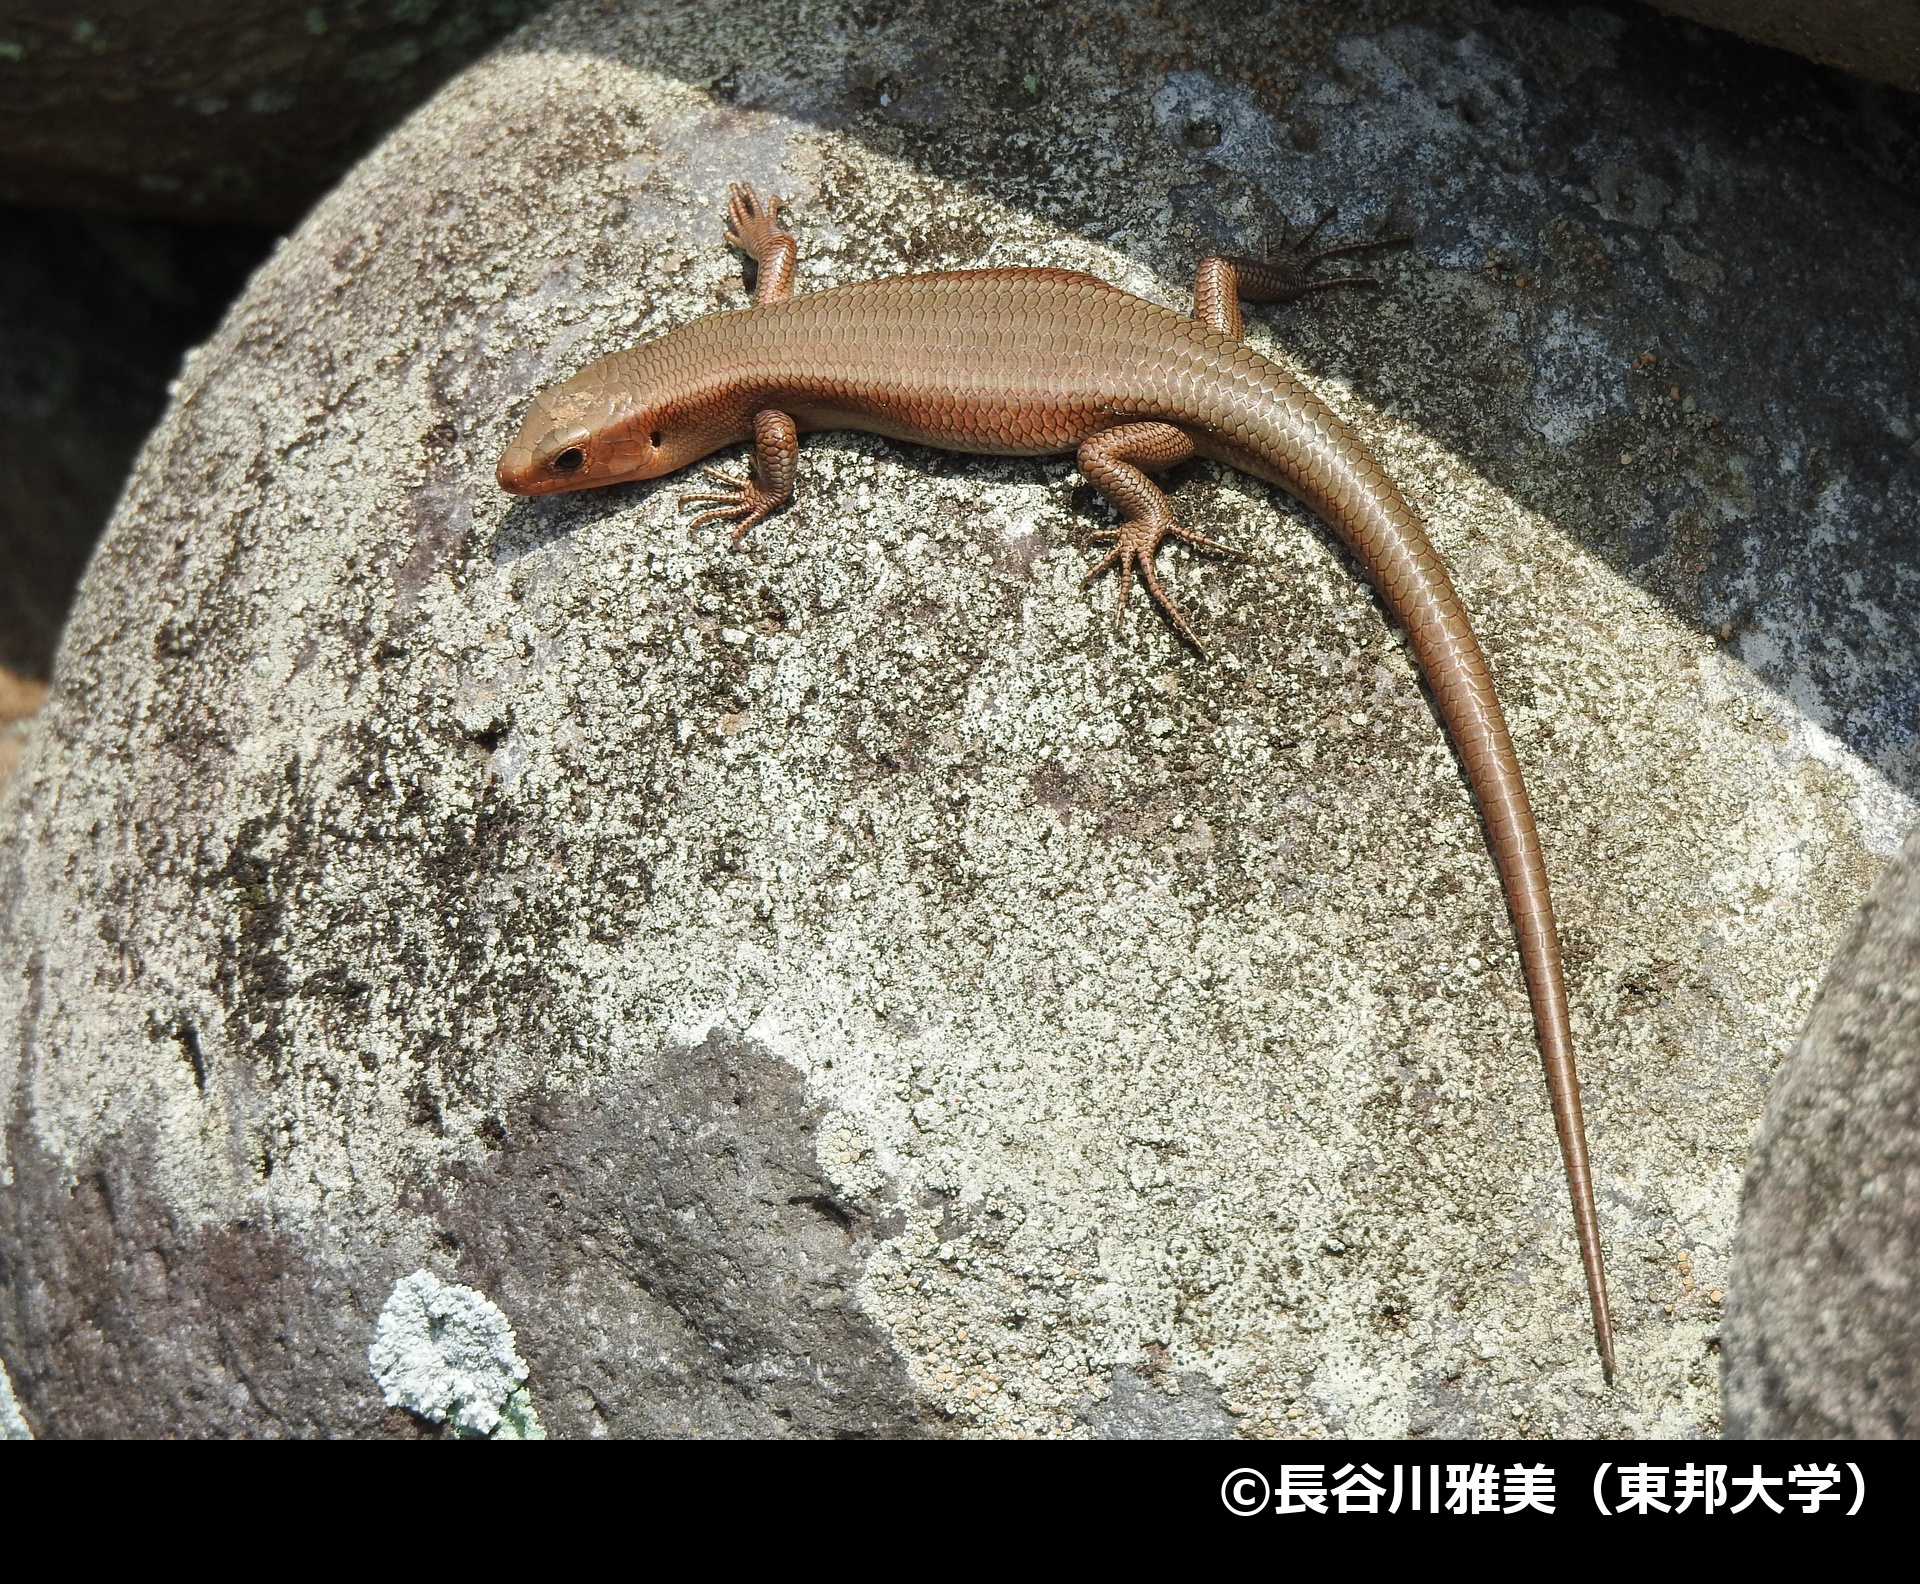
成体の頭胴長は60~96 mm程度。胴部の体鱗は普通28~30列。Plestiodon属の幼体は普通、頭胴部では暗色の地に明瞭な淡色の縦条が走り、また尾部は鮮やかな青色をしているが、本種ではこうした幼体色は微弱で、かつ成長にともなって急速に失われる傾向にある。地域の捕食者相に応じて形態的特徴が異なり、鳥類のみが捕食者である三宅島、八丈島、青ヶ島の集団は成体が大型になり、幼体色が微弱な傾向が強く、頭胴部の縦条が著しく不明瞭で、尾の青い部分は先端付近のみに限られる。かつての三宅島、八丈島、青ヶ島のように、高密度で生息し、少ない一腹卵数、隔年繁殖など独特の生活史的特性を示し、幼体が固有の色彩パタンを呈する個体群の安定的な生息地は八丈小島にしか残っていない。
【生活史】
活動中の個体は3~11月に見られ、12~2月は越冬期と考えられる。交尾は4月中旬~5月末に行われる。三宅島ではメスは隔年で4~12個の卵を産み、世話をする。ふ化後3年以上かかって性成熟し、平均寿命は6年弱と考えられている。縄張りはない。三宅島、八丈島、青ヶ島においては、かつては高密度で生息し、少ない一腹卵数、隔年繁殖など独特の生活史的特性を示していたが、伊豆諸島各島へのニホンイタチの導入後は、それらの特徴を持つ個体群の安定的な生息地は、イタチが分布しない無人島である八丈小島にしか残っていない。Plestiodon属のトカゲでは、交尾期にオス同士が互いに頭部を咬み合う闘争を行うが、高密度で生息していた三宅島ではこのような行動はほとんど見られない。
【生息・生育環境】
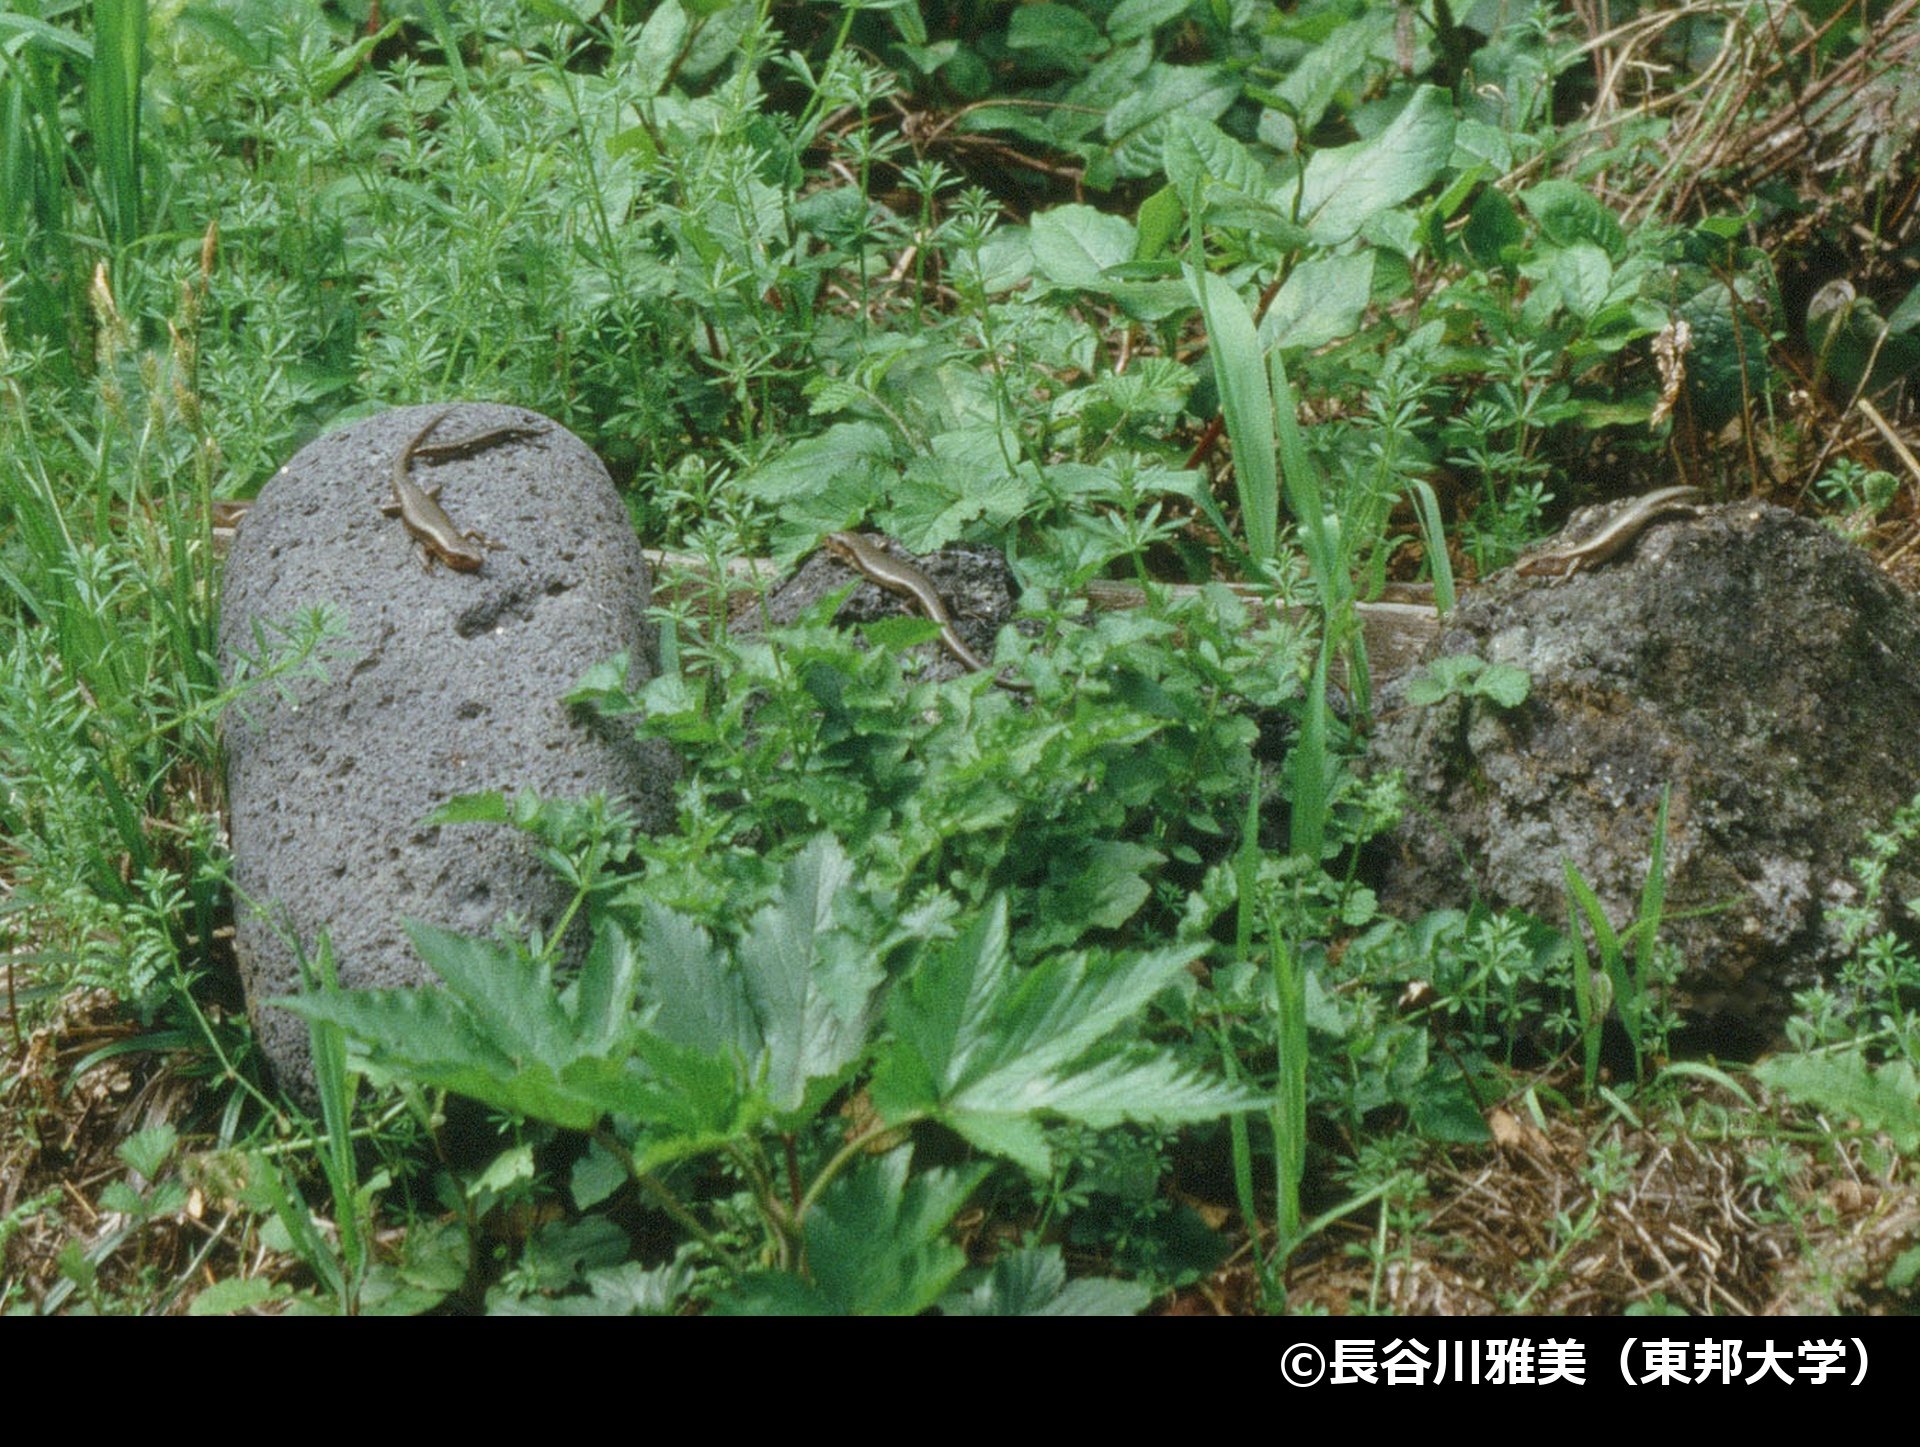
草原や海岸、火山のガレ場、疎林、常緑広葉樹の自然林・二次林、農山村内に生息する。三宅島ではイタチの導入以前には島内のあらゆる環境下で見られたが、導入後その大半で姿を消してしまい、現在では民家周辺の石垣を中心に生存しているに過ぎない。八丈島では、集落付近の石垣や茂み、畑地周辺などに生存している。一般にクモ類やミミズ類をはじめ、多くの地表性・半地中性無脊椎動物を食べる。三宅島では陸生甲殻類の端脚類を多く食べ、餌が不足する夏期にはアリ類も食べる。餌となる無脊椎動物に富み、同時に捕食者を回避するための隠れ場所があることが生息のための必要条件と考えられる。
| 生息・生育環境区分 | 【陸域_低標高地】裸地,森林,草地,田地・畑地,耕作放棄地,岩壁・ガレ場(石灰岩地等) 【陸域_平地部 海岸部】裸地,森林,草地,田地・畑地,耕作放棄地,住宅地,市街緑地,砂地・礫地 |
|---|---|
| 国土地域区分 | (1)奥山自然地域,(2)里地里山・田園地域,(5)沿岸域,(7)島嶼地域 |
【分布域】
種としては伊豆半島とその周辺、初島、伊豆諸島のうち大島から青ヶ島までのほとんどの島に分布する。島嶼集団ごとに遺伝的組成の違いが見られ、八丈島と青ヶ島の集団は八丈小島の集団とともに他の集団から分化している一方で互いにきわめて近縁で、三宅島の集団は他のいずれの集団とも異なる独自の遺伝的組成を持つ。
現在の生息・生育状況
【分布域の現況】
現在の分布域は、三宅島では集落周辺に散在し、それらを合わせても数十ha程度に限られる。八丈島では、島の西岸沿いの大賀郷永郷から八重根付近、横間ヶ浦、樫立、中之郷集落にかけて生息地が散在し、合わせて数十ha程度。青ヶ島については不明だが、集落内や外輪山沿いの各地に生息地が散在するようだ。かつては島全体に分布していたが、ニホンイタチの導入後は住宅地やその周辺の農地の石垣などをおもな生息場所として生き残っている。三宅島ではニホンイタチ導入後の十年間で生息個体数が18%以下に縮小したと推定され、他の2島でも急速に縮小したのは確かだが具体的な値は不明。八丈島では、1960年代初頭に高密度で生息していた記録のある末吉地区で現在全く見られなくなっている。また、八丈富士の東側山麓に近縁種かつ外来ニホントカゲが高密度で生息し、島の北半部各地でオカダトカゲとの交雑集団を形成している。オカダトカゲが生息する大賀郷北部でも交雑個体が散見され、純系のオカダトカゲのみからなる集団は八重根・向里付近から中之郷にかけての地域に限られていると考えられる。
【生息・生育地の現況】
ニホンイタチによる捕食圧のため、草原、ガレ場、森林など本来の生息場所は生存不能となっている。各島嶼個体群の命脈の最後の砦ともいえる民家や農地周辺の石垣も、1980年代半ばより進められている道路の拡張工事にともない撤去、あるいは隠れ場所として利用できない隙間のないコンクリート製のものに置き換えられてきており、生息環境は悪化している。
【個体数の現況】
三宅島では、ニホンイタチ導入以前の1970年代後半~1980年代初めの調査により、ふ化幼体を除いた生息個体数は400,000頭/km²との推定値が得られている。これがニホンイタチの導入で急速に減少し、1985年には50,000~100,000個体程度、現在では多く見積っても数百個体程度と推定されている。八丈島、青ヶ島においても、これとよく似た減少率を示すと思われる。いずれの島でもオカダトカゲの減少が目立ち始めるのはイタチを導入してから5年以内で、三宅島では早くも3年で1/100程度の著しい減少が見られた。現在でも、局所的にオカダトカゲが増え、幼体が目撃されるようになった場所があったとしてもそれは一時的傾向に過ぎず、本種が長期間安定的に目撃される場所が存在するのは難しい状況にある。
存続を脅かす要因
人為的に導入されたニホンイタチによる捕食の影響が、八丈島では1960年代初頭から、三宅島では1980年代から、青ヶ島では1980年代から現在にいたるまで継続している。イタチは、オカダトカゲが低密度になったあとも、主たる餌を節足動物等にシフトして高密度状態を保っている。最近の調査では、イタチの生息密度は在来個体群を形成している伊豆大島よりも外来個体群を形成している三宅島の方が高密度になっていることが明らかにされており、このことからも各島のオカダトカゲ個体群には高い捕食圧がかかり続けていると考えられる。付随的な要因として、1980年代半ば以降に進められている、道路工事にともなう石垣の撤去・改修があげられる。八丈島では、国内外来種のニホントカゲとの浸透性交雑が進行し、イタチの捕食圧による減少と相まって、遺伝的独自性の消失の危機にある。
| 要因の区分 | (過去) | 捕食(外来種による) |
|---|---|---|
| (現在) | 捕食(外来種による),交雑(外来種による) |
特記事項
特になし。
旧レッドリストカテゴリーと掲載名
| 第4次 2020 | 三宅島、八丈島、青ヶ島のオカダトカゲ | Plestiodon latiscutatus | LP |
| 第4次 2019 | 三宅島、八丈島、青ヶ島のオカダトカゲ | Plestiodon latiscutatus | LP |
| 第4次 2018 | 三宅島、八丈島、青ヶ島のオカダトカゲ | Plestiodon latiscutatus | LP |
| 第4次 2017 | 三宅島、八丈島、青ヶ島のオカダトカゲ | Plestiodon latiscutatus | LP |
| 第4次 2015 | 三宅島、八丈島、青ヶ島のオカダトカゲ | Plestiodon latiscutatus | LP |
| 第4次 | 三宅島、八丈島、青ヶ島のオカダトカゲ | Plestiodon latiscutatus | LP |
| 第3次 | 三宅島、八丈島、青ヶ島のオカダトカゲ | Plestiodon latiscutatus | LP |
| 第2次 | 三宅島, 八丈島, 青ヶ島のオカダトカゲ | Eumeces okadae | LP |
| 第1次 | ― | ― | ― |
都道府県レッドリストデータブック掲載状況(令和6年度末時点)
【東京都(伊豆諸島)】絶滅危惧ⅠB類(EN)
保護に係る法令指定状況(令和7年度末時点)
指定なし
5. 参考⽂献
Brandley, M. C., T. Kuriyama, and M. Hasegawa, 2014. Snake and bird predation drive the repeated convergent evolution of correlated life history traits and phenotype in the Izu Island scincid lizard (Plestiodon latiscutatus). PLoS ONE, 9: e92233. Hasegawa, M., 1984. Biennial reproduction in the lizard Eumeces okadae on Miyake-jima, Japan. Herpetologica, 40: 194-199. Hasegawa, M., 1985. Effect of brooding on egg mortality in the lizard Eumeces okadae on Miyake-jima, Izu Islands, Japan. Copeia, 1985: 497-500. Hasegawa, M., 1990a. The thrush Turdus celaenops, as an avian predator of juvenile Eumeces okadae on Miyake-jima, Izu Islands. Japanese Journal of Herpetology, 33: 65-69. Hasegawa, M., 1990b. Demography of an island population of the lizard, Eumeces okadae, on Miyake-jima, Izu Islands. Researches on Population Ecology, 32: 119-133. Hasegawa, M., 1994a. Insular radiation in life history of the lizard Eumeces okadae in the Izu Islands, Japan. Copeia, 1994 (3): 732-747. Hasegawa, M., 1994b. Demography, social structure and sexual dimorphism of the lizard Eumeces okadae. In: P. J. Jarman and A. Rossiter. (eds.), Animal Societies, Individuals, Interactions and Organization, pp.248-263. Kyoto University Press, Kyoto. Hasegawa, M., 1999. Impacts of introduced weasel on the insular food web. In: H. Ota (ed.), Tropical Island Herpetofauna: Origin, Current Diversity, and Conservation, p.129-154. Elsevier, Amsterdam. Hasegawa, M., 2003a. Ecological diversification of Insular Terrestrial reptiles: A review of the Studies on the Lizard and Snakes of the Izu Islands. Global Environmental Research, 7: 59–67. Hasegawa M., 2003b. Intraspecific Variation in sexual dimorphism and mating system in relation to interisland differences in predation pressure, p.172-189. In: Fox,S.F., J.K.McCoy and T.A.Baird (eds), Lizard Social Behavior, Johns Hopkins University Press, Kyoto. Hasegawa, M. and S. Nishikata, 1991. Predation by an introduced weasel Mustela itatsi upon Eumeces okadae on Miyake-jima, Izu Islands. Natural History Research, 1(2): 53-57. Hasegawa, M. and Y. Taniguchi, 1993. Visual prey discrimination of queen and worker ants by a generalist lizard. Journal of Ethology, 11:55-62. Hasegawa, M. and Y. Taniguchi, 1996. Behavioral discrimination of prey with various defense mechanisms by the lizard Eumeces okadae. Journal of Ethology, 14: 89-97. Kubo, K., T. Tachikawa, M. Hirose, M. Hasegawa, and E. Inoue, 2025. Habitat use and abundance of an introduced population of the Japanese weasel (Mustela itatsi): Comparison with the native population. PLoS ONE, 20(5): e0324 200. 栗山武夫,2012.オカダトカゲの色彩パタンの進化―捕食者に対応した地理的変異―.日本生態学会誌(特集1 種間相互作用の島嶼生物地理), 62: 329–338. Kuriyama T., K. Miyaji, M. Sugimoto, and M. Hasegawa. 2006. How do lizards produce their conspicuous colorμm Ultrastructure of the dermal chromatophores in a lizard with conspicuous body and tail coloration (Scincidae: Plestiodon latiscutatus). Zoological Science, (23): 793-799. Kuriyama, T., G. Morimoto, K. Miyaji, and M. Hasegawa, 2016. Cellular basis of anti-predator adaptation in a lizard with autotomizable blue tail against specific predators with different colour vision. Journal of Zoology, 300: 89–98. 栗山武夫・岡本卓・長谷川雅美・疋田努・五箇公一,2009.伊豆諸島八丈島へのニホントカゲの侵入.爬虫両棲類学会報, 2009: 124–127. Moyer, J.T., H. Higuchi, K. Matsuda, and M. Hasegawa. 1985. Threat to unique terrestrial and marine environments and biota in a Japanese National park. Environmental Conservation, 12(4): 293-301. Okamoto, T., T. Kuriyama, and K. Goka, 2013. An impact assessment of the alien lizard Plestiodon japonicus (Scincidae, Reptilia) on a threatened island population of the native lizard P. latiscutatus at an early phase of the biological invasion. Biological Invasions, 15: 2029–2037.
6. アセスメントサマリー(Assessment summary)
Plestiodon latiscutatus has been assessed for threatened wildlife of Japan Red List 5th edition. Plestiodon latiscutatus is listed as LP under criteria B1ab + LP②.
B1. Extent of occurrence estimated to be less than 100 km², and estimates indicating at least two of a-c: a. Severely fragmented or known to exist at only a single location. b. Continuing decline, observed, inferred or projected, in any of the following: (i) extent of occurrence (ii) area of occupancy (iii) area, extent and/or quality of habitat (iv) number of locations or subpopulations (v) number of mature individuals Local population that meets any of the following criteria. ②The local population that possesses distinctive regional characteristics and is considered important from a biogeographical perspective. This population is considered to be at risk of extinction at the local level.
| Habitat types | 【Terrestrial/Freshwater area_Low-altitude area】Bare area, Forest, Grassland, Farmland, Abandoned farmland, Cliff/Talus area (e.g. limestone area) 【Terrestrial/Freshwater area_Plain, Beach】Bare area, Forest, Grassland, Farmland, Abandoned farmland, Residential area, Urban green area, Sandy area/Gravelly area |
|---|---|
| Threat types | Predation (by alien species), Hybridization (with alien species) |
| Law designation status for conservation |
| 執筆者: | 岡本卓(京都大学)・栗山武夫(兵庫県立大学)・長谷川雅美(東邦大学) |
| Author: | Taku Okamoto, Takeo Kuriyama, and Masami Hasegawa |
| 協力者: |
公開年月:2026年3月
©長谷川雅美(東邦大学)
©長谷川雅美(東邦大学)